
秀丽线虫双重神经连接组的拓扑架构解析及其小世界性、核心梯度与模块拓扑
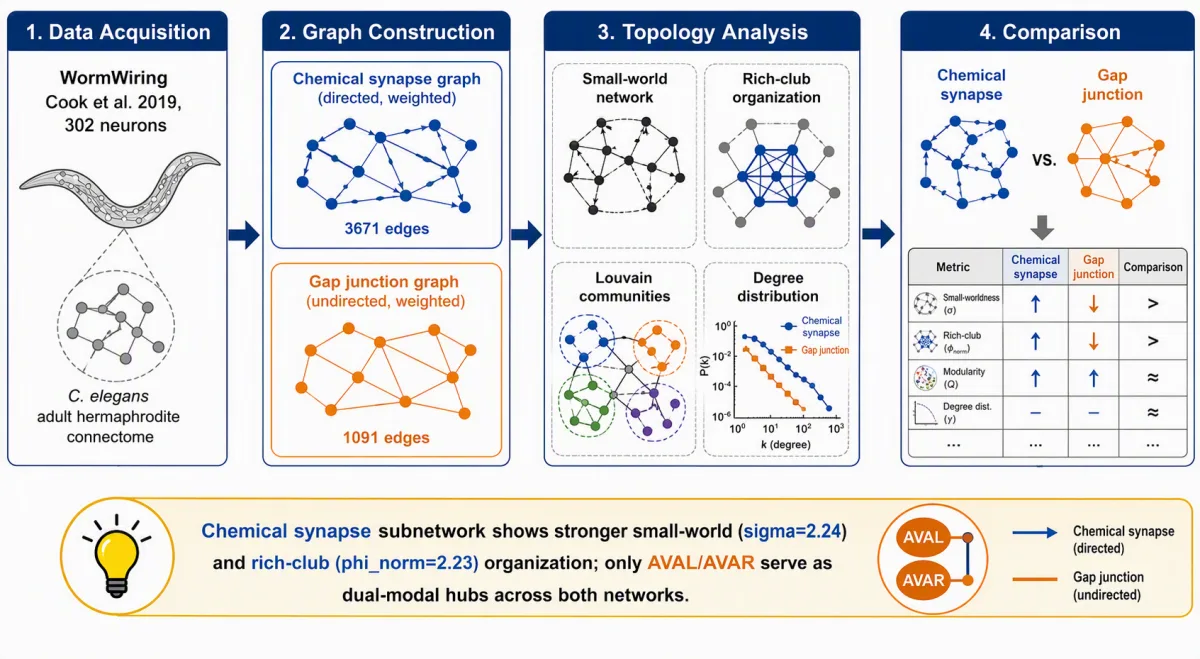
秀丽线虫成年雌雄同体神经系统是目前唯一步线层级的全动物完整神经连接图谱,包含定向化学突触与双向电(间隙连接)突触两种本质不同的信号传递通道。基于Cook等(2019)发布的 *WormWiring* 数据集,本研究首次在同等基准下对302个神经元构成的化学突触子网(定向加权图,3,671条边)与电突触子网(无向加权图,1,091条边)开展了系统拓扑对比。研究表明,虽然两子网均具备显著的小世界特性($\sigma_{\text{chem}}=2.24$, $\sigma_{\text{gap}}=2.74$),但在拓扑组织原则上发生剧烈分化:化学突触网络呈现出更密集的定向前馈结构与高度集中的富人俱乐部核心(峰值 $\varphi_{\text{norm}}=2.23$,由9个中间神经元主导);而电突触网络则呈现更强的权重异质性、更高的模块化程度($Q=0.68$ vs 0.51)与更分散的模块划分。全文仅有 AVA 倒退指挥神经元对(AVAL/AVAR)同时具备双模态枢纽地位,揭示了化学定向路由与电信号局部同步在神经系统中的功能互补性。
研究问题
神经系统如何在低步线成本下兼顾局部模块化信息处理与全局高效率信息整合,是网络神经科学的核心问题。在秀丽线虫中,化学突触属于单向、递质释放型点对点传输,而电突触(间隙连接)则是双向、直接离子与代谢物交换的连续耦合。既往研究多将二者合并为单一复合图或仅关注化学突触网,缺乏在统一拓扑框架下(覆盖小世界性、模块化、富人俱乐部及枢纽神经元身份)对两种模态的定量对比。本研究的核心问题是:化学突触与电突触在同一套302个神经元物理载体上,是否各自演化出了匹配其物理与生物学特性的差异化拓扑网络架构?两种通道如何分工与协作?
研究路径
研究团队基于 *WormWiring* 数据集( Cook et al. 2019, SI 4--6,2020年7月修正版),严格限定于神经元与神经元之间的连接(剔除肌肉、上皮等非神经细胞,提取出相同的302个神经元节点集): 1. 网络构建与基础拓扑:构建化学突触定向加权图(以串行电子显微镜切片计数为权重,3,671条边)与电突触无向加权图(1,091条边);计算度/强度分布、CV值、基尼系数以及Newman度与强度匹配性(Assortativity); 2. 小世界拓扑检验:计算特征路径长度 L 与全局/局部聚类系数 C,生成100个保持度分布的随机零模型(random_state=42),计算相对聚类率 \gamma、相对路径率 \lambda 及小世界指数 \sigma=\gamma/\lambda,并评估 z 分数; 3. 模块化与结构对齐:使用Louvain算法(分辨率1.0,种子42)进行社区划分,计算模块化 Q 值及两网络划分间的调整兰德指数(ARI)与归一化互信息(NMI),并结合感觉/中间/运动神经元三类功能标签进行联表分析; 4. 富人俱乐部(Rich-Club)与枢纽节点识别:计算度/强度加权富人俱乐部系数 \varphi(k) 及其零模型归一化值 \varphi_{\text{norm}}(k) 与 z 分数;按入度强度(化学)与总强度(电)排名筛选Top-10枢纽神经元,检验富人俱乐部成员资格与两网枢纽交集。
核心发现
研究结果显示,化学突触与电突触子网在拓扑组织上呈现出清晰的功能性分化。
- 两网络均具备小世界特性,但电突触产生了更高的相对聚类增益。化学网与电网的小世界指数分别为 \sigma_{\text{chem}}=2.24 与 \sigma_{\text{gap}}=2.74(均远大于1)。化学网拥有更紧密的全局整合能力(L=3.09 vs 3.70),但电突触网络表现出更高的相对聚类率(\gamma=3.39 vs 2.67),表明电突触以极低的步线成本提供了显著超额的局部紧密连接。
- 化学突触拥有紧密的路由核心,电突触呈现高度模块化与极高权重异质性。化学网拥有显著的富人俱乐部核心(峰值 \varphi_{\text{norm}}=2.23, z=8.35,包含以 AVAL/AVAR、AVBL/AVBR 等指挥中间神经元为核心的9个节点),服务于感觉到运动指令的高效定向路由;而电网的富人俱乐部较为宽泛弱化(峰值 \varphi_{\text{norm}}=1.39,24个节点),但模块化程度显著更高(Q=0.68 vs 0.51,分为15个社区 vs 8个社区)。两网社区划分重合度极低(ARI =0.192, NMI =0.368),表明两种通道将同一群神经元切割为完全不同的功能模块。
- 强度与度出现拓扑分化,仅 AVA 神经元对具备双模态枢纽地位。化学网Top-10入度强度枢纽高度集中于AV类指挥中间神经元(AVAL/AVAR领衔);而电网强度枢纽则由极高权重节点主导(应激中间神经元 ALA 强度达1,314,CANL/CANR 紧随其后),但 ALA 与 CAN 并非富人俱乐部成员(度较低),揭示了权重异质网络中“强度枢纽”与“度/富人俱乐部枢纽”的非对等性。在两网Top-10枢纽集合中,仅有控制倒退运动的 AVAL 和 AVAR 神经元跨网重叠(双模态枢纽)。
总结而言,本论文首次定量证明了秀丽线虫神经系统采用了“化学定向路由核心”与“电信号局部同步模块”双轨并行的拓扑原则,而 AVA 神经元对作为唯一双模态枢纽,担当了连接跨模态信号整合的关键桥梁。
适用边界
本研究结论的推导与应用受限于特定条件。首先,分析仅基于单只成年雌雄同体线虫的静态电子显微镜重构数据(Cook et al. 2019),无法直接涵盖个体间发育差异、性别差异(如雄性线虫)或经验依赖性神经塑性变化。其次,边权重采用电子显微镜切片重叠计数作为解剖学代理指标,并不直接等同于生理学电导或突触后电位强度;特别是在电突触网中,ALA 等神经元的极高强度源于广泛的切片贴附,其生理耦合效率仍需功能成像验证。此外,图分析限定于神经元-神经元网络,剔除了终末效应器(如肌肉与感觉器官)。
基于现有证据,该研究能够支持在网络神经科学中将化学与电突触作为功能互补的双层网络进行差异化建模与拓扑分析;但尚不足以支持对线虫活体动态神经活动进行实时功能预测,亦不能将节点拓扑特征直接等同于单一神经元在生理代谢层面的绝对重要性。